酵母での組換えタンパク質生産:3段階で作らせる理由
ジスルフィド結合システイン残基どうしが作るS-S結合。タンパク質の立体構造を留める橋になる。詳しく →(S-S結合)を何本も持つタンパク質を大腸菌で出そうとすると、培養液を遠心したとき、目的物の大半が上清ではなく沈殿(封入体)に落ちています。巻き直し(リフォールディング)をかけても、正しく折りたたまれた分はなかなか増えません。
理由は、大腸菌の細胞質細胞膜の内側のうち、核を除いた部分です。タンパク質の合成や多くの代謝反応がここで進みます。詳しく →が還元的で、S-S結合が酸化的に組まれないことにあります。酵母はこの点で有利です。単細胞でも真核生物なので、小胞体真核細胞内でタンパク質の折りたたみや分泌経路への送り出しを担う区画。酵母は持ち、大腸菌にはない。詳しく →の中でS-S結合を架け、できたものを培養上清へ出す経路を持っています。
ただし酵母には別の割り切りが要ります。付く糖鎖がヒト型ではないこと、そして量を狙うピキアメタノールを炭素源にできる酵母。強力なAOX1誘導と分泌生産に向き、高密度培養で組換えタンパク質を作る。詳しく →(Pichia pastoris)では、作らせる合図に引火点11℃のメタノールを使うことです。この記事では、酵母に向く仕事、培養の3段階、メタノールを増やしても収量が伸びない理由、上清から始める精製、作ると決める前の確認項目を説明します。
- 酵母が引き受けやすいタンパク質:S-S結合が多く、糖鎖がヒト型でなくてよいもの。大腸菌で封入体になる相手が候補です。
- なぜ3段階か:菌を増やす餌(グリセロール)と作らせる餌(メタノール)を切り分け、増殖とタンパク質合成を別々に制御するためです。
- メタノールを増やしても伸びない理由:誘導を律速するのは供給量ではなく、酸素の供給と冷却、そして上清でのプロテアーゼによる分解だからです。
1. 酵母は、どんなタンパク質なら引き受けられるのか
酵母が引き受けやすいのは、S-S結合が多く、糖鎖タンパク質に付加される糖の鎖状構造で、抗体の有効性・免疫原性などに影響する重要な品質特性。詳しく →がヒト型でなくてよいタンパク質です。 大腸菌の細胞質では封入体に落ちる相手が、ここでは分泌の経路に乗ります。
小胞体の中は酸化的で、システインの硫黄どうしが正しく架かる。できあがったものは培養上清へ出るので、細胞を壊さずに回収を始められます。
培地は安く、動物由来成分も要らず、培養は数日で終わる。CHO細胞抗体など組換えタンパク質の生産に広く使われる、チャイニーズハムスター卵巣由来の培養細胞です。詳しく →なら2週間ほどかかるので、開発の回転は速くなります。
割り切るのは糖鎖です。ピキアが付けるのは、マンノースが多く連なった高マンノース型で、ヒトの複合型にはなりません。
糖鎖が薬効や血中での半減期に効くタンパク質は、だからここで候補から外れます。糖鎖をヒト型に作り替える道は酵母の糖鎖ヒト化に、宿主全体の選び方は微生物の宿主・発現系の選び方にまとめています。
実際に使われてきた酵母は、主に2種類です。
- Saccharomyces cerevisiae(パン酵母):承認品の実績が古い宿主。B型肝炎ワクチンの表面抗原、HPV(ヒトパピローマウイルス)ワクチンのウイルス様粒子、インスリンの前駆体が、この酵母で作られてきました。
- Pichia pastoris(ピキア):高密度まで育ち、量を狙える宿主。2009年に米国で承認された遺伝性血管性浮腫の急性発作の薬エカランチドのように、治療用タンパク質の実績もあります。
密度の差は、糖の代謝の違いから来ます。S. cerevisiaeパン・ビール酵母として食経験が長い酵母。遺伝子操作ツールが豊富で、経口・食品関連の用途と親和する。詳しく → は糖を多く与えるとエタノールを作る性質(クラブツリー効果)があり、菌体の密度が頭打ちになります。
ピキアにはこの性質がないので、糖を与えてもエタノールを溜めず、高密度まで育ちます。量を狙う工程がピキアに寄るのは、このためです。
2. なぜ増殖・切り替え・誘導の3段階に分けるのか
菌を増やす段階と、タンパク質を作らせる段階を、餌を替えて切り分けるためです。 増殖とタンパク質合成を一度にやらせると、どちらも中途半端になります。
目的の遺伝子を動かすのは、AOX1というプロモーター(遺伝子の転写が始まる位置の配列)です。もとはメタノールを分解する酵素アルコールオキシダーゼメタノール代謝の入り口を担う酵素。その遺伝子AOX1のプロモーターがPichiaの強力な誘導に利用される。詳しく →の遺伝子の入口で、メタノールがあると強く働き、グリセロールが十分にある間は抑えられています。
誘導をかけた菌では、この酵素1つだけで可溶性タンパク質の30%を超えることもある(Cereghino & Cregg 2000)。この強い発現目的タンパク質をコードする遺伝子を宿主細胞内で転写・翻訳させ、機能的なタンパク質として産生させる工程。詳しく →を目的タンパク質に振り向けられる点に、ピキアの発現系の価値があります。
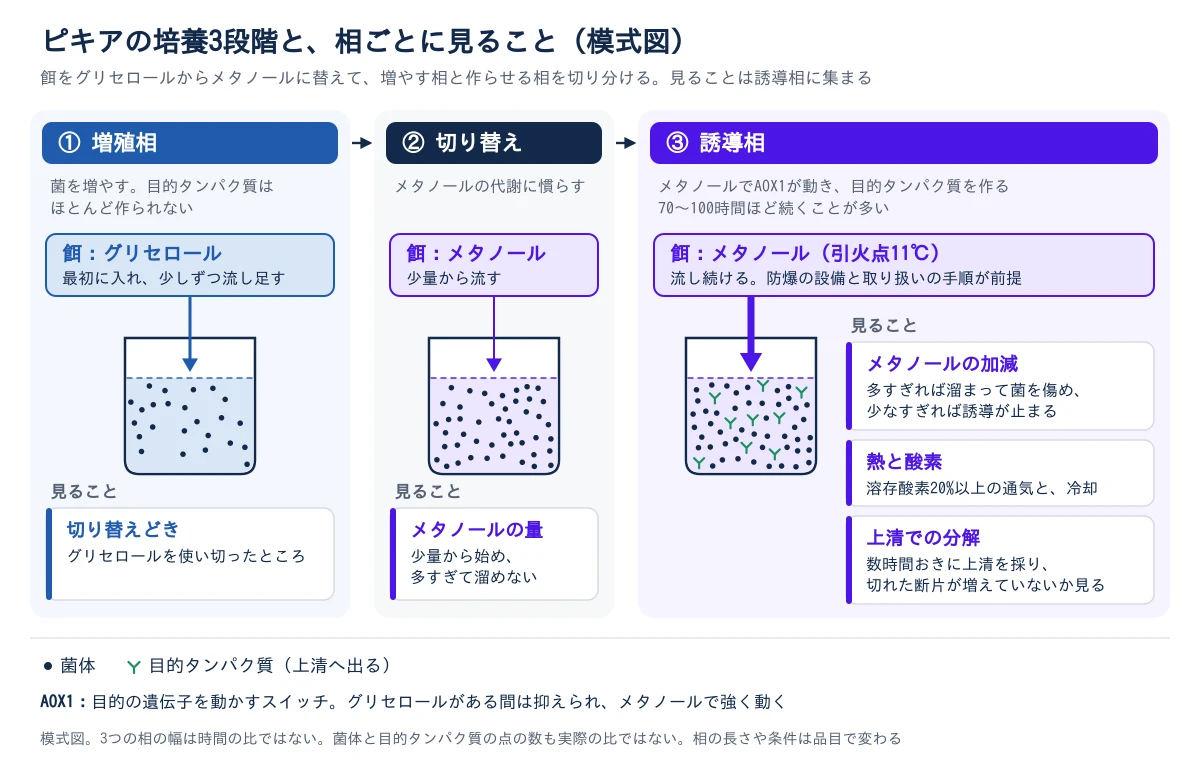
餌の効き方が相で入れ替わるので、培養は3つに分かれます。
- 増殖相:グリセロールで培養を始め(バッチ)、少しずつ流し足して(フェドバッチ)菌体を増やします。AOX1Pichiaでメタノール資化性を利用して強力に誘導するプロモーター。詳しく →は抑えられ、目的のタンパク質はほとんど作られません。
- 切り替え:グリセロールを使い切ったところで、メタノールを少量から流し、菌をメタノールの代謝に慣らします。
- 誘導相:メタノールを流し続けて作らせます。条件で幅はありますが、70〜100時間ほど続くことが多く、工程の成否を決める相です。
この流れで、菌体は湿重量で1 Lあたり400〜500 g、乾燥重量なら100〜150 gまで育ちます。分泌させれば上清の宿主タンパク質が少ないので、精製の入口も軽い。
分泌には α-factor出芽酵母のα接合因子に由来する、酵母の分泌発現で定番のプレプロ型リーダー。詳しく → のプレプロ配列(分泌の経路へ送るため N末端に付ける配列)を使うのが定番で、Kex2ゴルジ体でプロ配列を切断する酵母のプロテアーゼ。という酵素が切って成熟した形で出てきます。培地細胞を体外で生存・増殖させるために必要な栄養・エネルギー源・成長因子などを含む液体または固体の環境基盤。詳しく →は BMGY・BMMY のような規定の組成が脱水品やキットで売られ、高密度発酵向けの基礎塩培地と微量塩(PTM1)もあります(酵母 発酵培養用培地)。
増やす相と作らせる相がはっきり分かれているので、トラブルの大半は誘導相の運転に集まります。
3. メタノールを増やしても、なぜ収量は伸びないのか
誘導相に入ると、「メタノールをもっと流せば、作る量も増えるのでは」と考えたくなります。ところが、ある量を超えると、流しても収量は伸びず、むしろ菌が弱ります。誘導を律速しているのは、メタノールの供給量ではなく、酸素の供給・冷却と、上清での分解だからです。
理由は、メタノールの代謝そのものにあります。AOX1が作るアルコールオキシダーゼは、メタノールをホルムアルデヒドと過酸化水素に酸化します(Cereghino & Cregg 2000)。
この反応は酸素を大量に食い、熱を出し、生じる中間体は菌に毒です。流す速さがこの処理能力を超えると、未代謝のメタノールと中間体が溜まり、菌が傷みます。
だから、誘導相の運転でまず押さえるのは酸素と熱です。
- 酸素:メタノールの酸化に酸素が要るので、溶存酸素培養液に溶けている酸素の濃度。細胞の呼吸を支えるため一定に保つ制御対象。詳しく →を20%以上に保つ通気が前提です。足りなければ、流したメタノールは代謝されずに溜まります。
- 冷却:発熱が誘導相の数日間ずっと続くので、槽の冷却能力が追いつかないと温度が上がり、タンパク質の質が落ちます。
- 供給の制御:多すぎれば溜まり、少なすぎれば誘導が止まる。排ガス中のメタノール濃度まで見て加減します。供給は Sartorius や Eppendorf の発酵システムが持つフィード制御で組みます。
もう1つの律速が、上清に出したタンパク質が切られることです。高密度の培養では、菌から出るプロテアーゼ(タンパク質を分解する酵素)が分泌物を分解し、収穫のころには目的の形が減っていることがあります。対策は品目ごとに効きが違い、先には決められません。
- pH:培養液のpHを下げ、プロテアーゼの働きを抑える。
- 培地への添加:カザミノ酸のようなタンパク質源を足し、プロテアーゼの標的を分散させる。
- 株:プロテアーゼ遺伝子を欠いた株(SMD1168 など)を使う(Cereghino & Cregg 2000)。
誘導のあいだ数時間おきに上清を採り、切れた断片が増えていないかを追う。これが、収穫の時期を決める材料になります。
メタノールを使えない工場でも、GAP のような構成的プロモーター(誘導剤が要らず、常に動く)に切り替えれば、ピキアを使う道は残ります。誘導の入り切りという制御性は手放しますが、設備の制約からは自由です。株を作り込んだあとで工場が対応できないと分かる順番が、いちばん高くつきます。
4. 上清から始める精製で、なぜ酵母向けのHCP試験が最初に要るのか
分泌させたタンパク質の精製は、細胞を遠心やろ過で除いた上清から始まります。宿主タンパク質が少ない液から入るので、最初のキャプチャー(捕捉)の負担は軽い。品目によっては上清で1 Lあたり数gに届きます。
軽い代わりに、上清には先ほどの分解断片と、糖鎖の長さが1本ごとに違うタンパク質が混ざります。高マンノース型の糖鎖は鎖の長さにばらつきがあるため、クロマトグラムのピークが広がったり、複数に割れたりして見えます。
管理する不純物は宿主細胞タンパク質(HCP、宿主の細胞に由来して製品に残るタンパク質)で、酵母向けのELISA抗原と抗体の結合を酵素反応による発色などで検出し、目的の物質の有無や量を測る手法です。不純物や力価の測定に広く使われます。詳しく →を最初に用意します。 大腸菌用やCHO用の試験は流用できません(酵母向けHCP ELISA)。大腸菌のように菌体が内毒素(エンドトキシングラム陰性菌の外膜由来の発熱性物質(LPS)で、注射剤では厳しく管理し、LAL試験などで測定します。詳しく →)を持つ心配が小さいのは、酵母の利点です。精製全般は微生物由来タンパクの精製で解説しています。
5. 酵母で作ると決める前に、何から確かめるのか
株を作り込んでから「使えない」と分かるのが、いちばん高くつきます。作りたいタンパク質の配列を手元に置き、糖鎖の重要性とメタノールの設備から先に確かめます。 開発の担当なら、次の順に見ます。
- 糖鎖の重要性:糖鎖が薬効、半減期、免疫原性に効くかを見る。効くなら酵母を外すか、糖鎖工学細胞株や酵素で糖鎖の構造を制御し、ADCCなどの性質を作り込む技術。詳しく →株への投資を見込む。
- 配列の確認:N型糖鎖が付く並び(アスパラギン・任意のアミノ酸・セリンまたはスレオニン)がないかを見る。意図しない糖鎖が付くと均一性が崩れる。
- メタノールの設備:工場がメタノールを扱えるかを確かめる。扱えないなら GAP のような構成的プロモーター誘導剤なしに常時発現するプロモーター。酵母のGAPなどが代表。詳しく →で組む。
- 通気と冷却:誘導相の数日間、溶存酸素を20%以上に保つ通気と冷却の能力があるか。
- 上清での分解:分解されやすいかを小スケールで時間を追って確かめ、pH・培地への添加・欠損株の順に試す。
- HCPの試験:酵母向けのHCP ELISAを、いつ、誰が用意するかを決める。
購買や営業の担当は、「ピキアで何g/L出るか」だけでなく、「メタノールの設備があるか」と「誘導相を何時間回せるか」を受託先に尋ねると、話が早く進みます。 糖鎖を作り替える場合の株の入手と特性解析は、別の投資として見積もりに入れます。
参考文献
- Cereghino JL, Cregg JM. "Heterologous protein expression in the methylotrophic yeast Pichia pastoris." FEMS Microbiology Reviews. 2000;24(1):45-66. PMID: 10640598. https://pubmed.ncbi.nlm.nih.gov/10640598/(AOX1の誘導と可溶性タンパク質の30%超、メタノールのホルムアルデヒドと過酸化水素への酸化、培養の3相、プロテアーゼ欠損株分泌タンパク質の分解を減らすため、プロテアーゼを欠損させた宿主株。)
- "Komagataella phaffii (Pichia pastoris) as a Powerful Yeast Expression System for Biologics Production." Frontiers in Bioscience-Elite. 2024;16(2):019. DOI: 10.31083/j.fbe1602019. https://www.imrpress.com/journal/FBE/16/2/10.31083/j.fbe1602019
- Kalbitor(ecallantide)米国添付文書(Pichia pastoris の酵母細胞で組換えDNA技術により産生されるタンパク質であるという記載)
- Invitrogen(Thermo Fisher Scientific), Pichia Fermentation Process Guidelines(グリセロールのバッチ・フェドバッチ、メタノール誘導の3相、溶存酸素と菌体密度の目安)

次に読む
微生物・発酵/酵母この製造の全体像を、工程マップで見るこの記事から広げる
この分野の新着を、メールで受け取る
こうした製造・分析・品質の解説記事と、装置・試薬の新製品ニュースを毎週水曜の朝にお届けします。登録は無料で、いつでも解除できます。
登録によりプライバシーポリシーに同意したものとみなします。閲覧の記録(どのページから、どの会社のサイトへ移ったか)を、ご案内のために使います。
目次・関連閉じる


Proglenth(proglenth.com) https://www.proglenth.com/article/yeast-recombinant-protein-production