陰イオン交換でAAVの空カプシドを分ける:条件を詰める順番
AAVの空カプシドゲノムを内包しないAAVの殻。治療効果に寄与せず、必要な量を届けるための総投与カプシド量を押し上げる不純物として扱われる。詳しく →と充填カプシドウイルスの遺伝物質を包むタンパク質の殻。AAVでは直径数十ナノメートルの正二十面体の構造をとる。詳しく →は、質量で3分の1以上違います。それなのに、外側の殻は同じタンパク質で、大きさも同じです。中身が違うだけの2つの粒子を、どう分けるのでしょうか。
手がかりは、殻の中のゲノムDNAが持つ負の電荷が、殻の外側の電気的な性質をわずかに負へ引くことだけです。陰イオン交換(AEX、anion exchange)クロマトグラフィー固定相と移動相の間での物質の相互作用(分配・吸着・イオン交換など)の差を利用して、混合物中の成分を分離・精製する操作の総称。詳しく →は、そのわずかな差を、塩の濃度やpHの勾配で引き伸ばして、2つの山に分けます。空が先に、充填が後に出てくるのが基本の姿です。
空が多いロットは、同じ量の遺伝子を届けるのに、投与する粒子が増えます。AEXの条件の詰め方が充填カプシドの純度と収率を決めるので、製造や技術の担当には工程の再現性が、購買には担体の仕様確認が、品質保証には分析との突き合わせが関わります。担体の選び方はAAVの空カプシド分離:モノリス・メンブレン・樹脂の選び方に任せ、ここでは条件を詰める順番を扱います。
分ける相手 ― 質量は違うのに外側は同じ
AAV8の空の殻は、約3.7 MDa(メガダルトン)です。ゲノムが入るとその分だけ重くなり、殻の3分の1以上増えます。ところが殻をつくるのは、どちらも同じ60個のカプシドタンパク質AAVの外殻を構成するウイルスタンパク質で、VP1・VP2・VP3の3種類のサブユニットから成る。詳しく →で、二十面体の直径も約26 nmで変わりません。
アフィニティ捕捉標的に特異的に結合する担体で目的物だけをつかまえる最初の捕捉工程。AAVでは幅広い血清型に効く樹脂や血清型特異的な樹脂を使う。詳しく →は、殻の表面の構造を認識します。中身の有無は見えないので、捕捉工程を通しても、空と充填の比は大きくは変わらず、分離は後段に持ち越されます(AAVアフィニティー樹脂の選び方)。
残る手がかりが電荷です。一本鎖のゲノムはヌクレオチド核酸を構成する単量体単位で、塩基・糖・リン酸から成り、DNAやRNAの最小構成要素。詳しく →ごとにリン酸を持ち、4.7 kbなら4,700個ぶんの負電荷を抱えています。殻の内側にあっても、外側の実効電荷をわずかに負へ引きます。報告されている等電点は、空が6.3、充填が5.9ほどで、差は0.4です。同じ段ボール箱で、中身が入った箱と空の箱を、外側に帯びたごく弱い電気の違いだけで選り分ける作業にたとえられます。
空と充填は外側がほぼ同じなので、分離の窓は最初から狭いと考えて、条件を組みます。
AEXが差を広げる仕組み ― 結合させて、塩かpHで外す
担体の表面には、第四級アンモニウムのような正電荷の官能基が並んでいます。負に帯電した粒子はここに静電的に捕まり、より負に寄った充填カプシドが、わずかに強く保持されます。
結合させたあとで、塩の濃度を上げていく(またはpHを変える)と、保持の弱い空が先に外れ、強く保持された充填が後から外れます。原理は単純ですが、元の差が小さいので、勾配の傾きや条件のわずかな違いが、そのまま分離に響きます。
担体の形にも癖があります。26 nmの粒子は、一般的な樹脂の細孔には入りにくく、結合に使えるのは粒子の外側の表面が中心です。そのため、液を対流で通すモノリスやメンブレン、または粒径が小さく細孔の大きい樹脂が候補です。カタログの結合容量担体が結合できる目的物の量。大きな粒子は樹脂ビーズの細孔に入りにくく、結合容量を稼ぎにくい。詳しく →は、タンパク質を標準物質として測った値のことが多く、AAV遺伝子治療で遺伝子を運ぶウイルスベクター。血清型によって集まりやすい組織が異なる。詳しく →での容量は別に確かめます。メーカーに聞くのは、容量の値ではなく「AAVで測った容量と、そのときの流速」です。
この工程の担体に求めるのは、結合容量の大きさより、2つの山を切り分ける切れ味です。
条件を振る順番 ― 血清型、pH、塩、傾き
条件の探索は、決める順番で効率が変わります。
最初に血清型AAVのカプシドの種類による分類。組織指向性が異なり、狙う臓器や細胞に応じて選び分けられる。詳しく →を確定させます。カプシド表面のアミノ酸の組成が違えば、実効電荷も最適なpHも変わるので、探索の範囲そのものが動きます。AAV2で詰めた条件をAAV9に持ち込むと、山が重なって終わることがあります。血清型によって、充填のほうが先に出る例も報告されています。別の血清型で使えた条件は、出発点にはなっても答えにはなりません。
次にpHを振ります。pHは殻の表面の電荷の状態を動かすので、塩を振る前に、山がいちばん離れるpHを先に探します。塩とpHを同時に振ると、どちらが効いたのか分からなくなります。pHで溶出する方式は、緩衝液の調製の精度やpH計電極を使って液の酸性・アルカリ性の度合い(pH)を測る計器です。培養液やバッファの調製・管理に欠かせない基本装置です。詳しく →の校正が、そのまま再現性に響きます。
そのうえで、塩の傾きを詰めます。低い塩濃度で空と充填の両方を結合させ、塩を増やしていきます。傾きを緩くすれば山は離れますが、溶出液の体積が増えて薄まり、時間もかかります。急にすれば早く終わる代わりに、山が重なります。塩の種類も変数で、定番の塩化ナトリウムを塩化コリンに替えて、分取用の樹脂で充填カプシドを約9割まで高め、回収率は約75%だったという報告があります(AAV精製、塩化コリンで実カプシド9割へ)。
塩とpHは同時に振らず、1つずつ振って、どちらが山を離したのかを分かるようにします。
山の見分け方と線の引き方 ― A260/A280と分析の突き合わせ
溶出中に、どちらの山かを読める手がかりが、吸光度の比です。核酸は260 nmに、タンパク質は280 nmに吸収を持つので、ゲノムが入っていれば260 nmの側が持ち上がります。目安の値は、空でおよそ0.7、充填でおよそ1.3で、倍近い差があります。実際の値はゲノムの長さや測定条件で動くので、自社の系で確かめた値を使います。ピークの見当を付け、集める範囲の目安にするには十分に役立ちます。
ただし、比は判定の根拠ではありません。部分的にしかゲノムが詰まっていない粒子は、充填の山と一緒に出てきて、比にはほとんど現れないという報告があります。ピークの同定には、吸光度の比で見当を付け、PCR、ELISA抗原と抗体の結合を酵素反応による発色などで検出し、目的の物質の有無や量を測る手法です。不純物や力価の測定に広く使われます。詳しく →、AUCなどで裏づける進め方が報告されています。
2つの山は、たいてい裾で重なります。製造直後は空が全体の過半を占めることが多く、少数派の充填を、よく似た多数派から選り分ける作業です。充填側の山の中心だけを集めれば空の混入は減りますが、境目にいた充填も一緒に捨てて、収率が落ちます。範囲を広げれば収率は上がり、空が残ります。規格として求められる空実比全カプシドのうちゲノムを積んだ実カプシドが占める割合。投与量設計や安全性に直結する重要な品質指標となる。詳しく →と、許せる収率の交点を探す作業です。
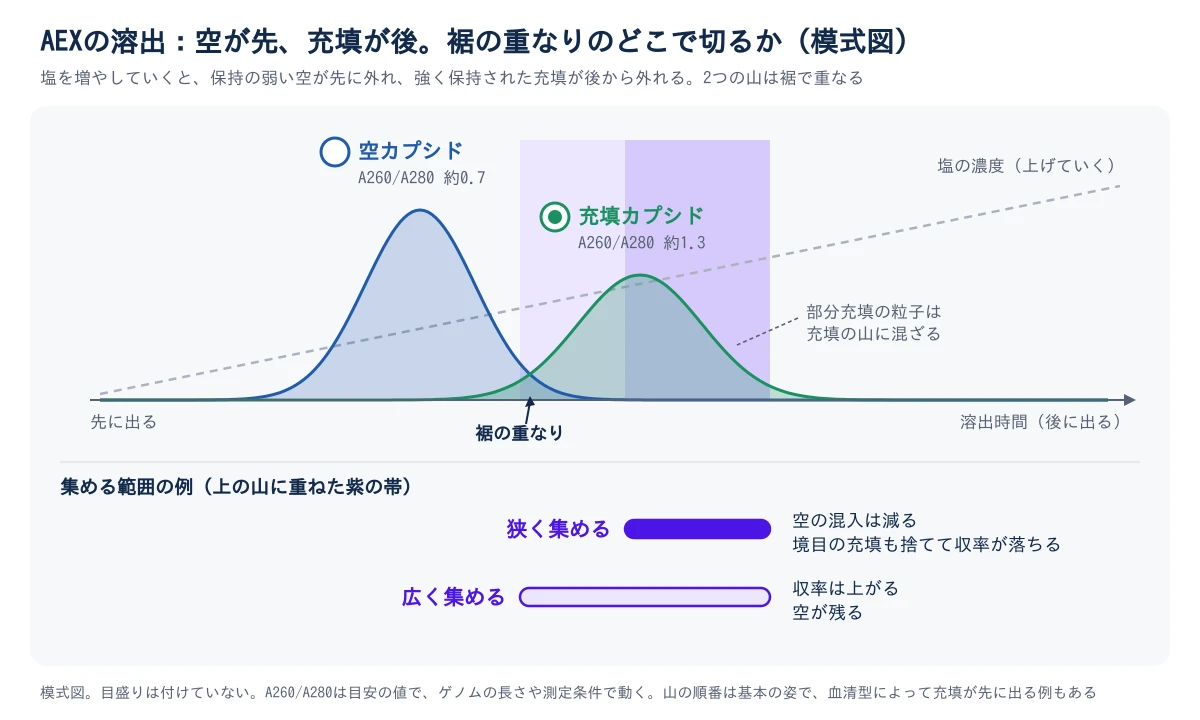
線を引く場所は、開発段階で決めきります。溶出画分を分析用超遠心高速回転で粒子を沈めて濃縮する方法。濃縮力と純度に優れるが、扱える体積が限られスケールに壁がある。詳しく →(AUC)や電荷検出質量分析個々のイオンの質量と電荷を同時に測る質量分析法です。ウイルスベクターのような大きく不均一な粒子の分析に向きます。詳しく →で測り、どの範囲を集めればどの空実比になるかの対応表を作ります。この表があれば、製造では吸光度の比だけで同じ判断を再現できます。日常のロット管理には、分析用のAEXカラムが使われ、Thermo Fisher Scientific の ProPac 3R SAX や、Sartorius の CIMac AAV full/empty があります。粒子数とゲノム量をデジタルPCRとELISAで測って比を取る方法もありますが、部分充填を充填側に数えるので、クロマトグラムと突き合わせて読みます。測り方で数字が変わる点はAAVの空カプシドとは?にあります。
上流の空の割合も効きます。トランスフェクション培養細胞に外来の核酸を導入する操作。ウイルスベクターの一過性の産生などに用いられる。詳しく →の条件で空の生成比が動くので、AEXに持ち込む前の比が良ければ、同じ収率でより高い純度に届きます(三重トランスフェクション)。上流で充填比を引き上げる試薬も売られていますが、数字は各社の主張です(ニュース)。
A260/A280波長280nm付近の紫外線吸収を利用してタンパク質濃度を推定する測定法。芳香族アミノ酸などが光を吸う性質を使う。詳しく →は判定の根拠ではなく、線を引く場所を決める道具です。線は、分析の対応表と一緒に決めます。
よくある失敗 ― 持ち込みと線引き
1つめは、別の血清型の条件を持ち込むことです。山が重なる、溶出の順番が変わる、といった形で現れます。2つめは、線を引く根拠となる対応表を持たず、製造現場が吸光度を見ながら勘で切ることです。ロットが変わると、同じ画分を集めたつもりでも空実比がずれます。
3つめは、結合容量の数字をそのまま見積もりに使うことです。タンパク質で測った値や、空の割合が違う液で測った値は、自社の液には当てはまりません。4つめは、塩とpHを同時に振って、効いた条件を特定できなくなることです。
明日から確かめられること
手元の条件や、メーカーとの打ち合わせに、次の項目を当ててみてください。
- 条件の根拠は、対象の血清型で取ったデータか。別の血清型のデータの流用ではないか
- pHを先に振り、そのあとに塩を振る順番で検討したか
- 担体の容量は、AAVで、流速と空の割合を添えて確かめた値か
- 溶出中の吸光度の比の記録と、画分ごとの空実比の対応表があるか
- 集める範囲は、規格の空実比と収率の両方から逆算して決めたか
- 緩衝液溶液のpHを一定範囲に保つために使用される弱酸と共役塩基の混合溶液。詳しく →の調製の精度とpH計の校正を、記録に残しているか
- 上流の空の割合が変わったとき、ロード量を見直す手順があるか
製品はAEX樹脂、メンブレンクロマトグラフィー、クロマトグラフィーシステム、測定にはデジタルPCRの各ページで比べられます。製造全体の流れはAAVの製造プロセス、血清型による違いは血清型と指向性で読めます。
参考文献
- Pierson EE, Keifer DZ, Asokan A, Jarrold MF. Resolving Adeno-Associated Viral Particle Diversity with Charge Detection Mass Spectrometry, Anal Chem. 2016;88(13):6718-6725(AAV8の空と充填の質量)
- ACUVRA: Anion-Exchange Chromatography UV-Ratio Analysis, AAPS J. 2022(A260/A280の比とAEXを組み合わせたAAVの空実の定量)
- Waters, An anion exchange chromatography method for monitoring empty capsid content in adeno-associated virus serotype AAV8(部分充填の粒子は充填の山と一緒に出て、吸光度の比に現れにくい)
- Anion-exchange HPLC assay for separation and quantification of empty and full capsids in multiple adeno-associated virus serotypes, Mol Ther Methods Clin Dev. 2021(血清型ごとの溶出条件)
- McAnany Y, et al. Preparative choline-based anion-exchange chromatography for enrichment of full adeno-associated virus capsids. J Chromatogr A. 2025(塩化コリンによる充填カプシドの濃縮)
- Cell & Gene Therapy Insights, Alternative solutions to separate AAV full and empty capsids using anion exchange(2024年。吸光度の比でピークの見当を付け、PCR、ELISA、AUCなどで裏づける)
- Thermo Fisher Scientific, AAV polishing: full capsid enrichment by AEX(infographic)(血清型による電荷差と溶出順の違い)

次に読む
遺伝子治療/AAVベクターこの製造の全体像を、工程マップで見る


この記事に関連する工程
この分野の新着を、メールで受け取る
こうした製造・分析・品質の解説記事と、装置・試薬の新製品ニュースを毎週水曜の朝にお届けします。登録は無料で、いつでも解除できます。
登録によりプライバシーポリシーに同意したものとみなします。閲覧の記録(どのページから、どの会社のサイトへ移ったか)を、ご案内のために使います。
目次・関連閉じる


Proglenth(proglenth.com) https://www.proglenth.com/article/aav-aex-full-empty-separation