抗体フラグメントとは?大腸菌で鎖はできるのに活性が出ない理由
大腸菌で発現させた抗体フラグメント全長抗体から抗原認識に必要な部分だけを取り出した分子。Fcを持たず小さく、微生物でも作れる。詳しく →が、SDS-PAGESDSで変性させたタンパク質をゲル板上でサイズ分離する電気泳動。CE-SDSの前身にあたる手法。詳しく →(電気泳動)では狙いの位置にバンドとして出ているのに、抗原への結合がまるで出ない。抗体フラグメントとは、全長の抗体(IgG)からFc(細胞への働きかけと血中の滞留を担う部分)を外した、約15〜50 kDaの小さな抗体分子です。
鎖は作れています。足りないのは、その鎖を折りたたんだ形で留めるジスルフィド結合(S-S結合)です。Fab重鎖の一部と軽鎖がジスルフィドで連結した約50kDaの抗体フラグメント。2本鎖で折りたたみがやや複雑。詳しく →には5本のS-S結合があり、そのうち1本は重鎖抗体を構成する2種類のポリペプチド鎖のうち分子量が大きい方で、抗体の基本骨格と主要な機能領域を担う。詳しく →の断片と軽鎖抗体を構成する2種類のポリペプチド鎖のうち分子量が小さい方で、重鎖と対になって抗原結合部位を形成する。詳しく →をつないでいます。 鎖ができただけでは分子にならないので、これをどこで組ませるかが、宿主の選択から精製までを決めます。
この記事では、Fcを外すと何が消えて何が残るのか、大腸菌でS-S結合を組ませる3つの道、酵母との収量の差、Protein A抗体に特異的に結合するProtein Aを担体に固定し、抗体だけを選択的に捕まえて精製する手法です。抗体医薬の最初の精製工程として定番になっています。詳しく →が効かない捕捉、そして腎臓から抜ける速さへの対処を説明します。
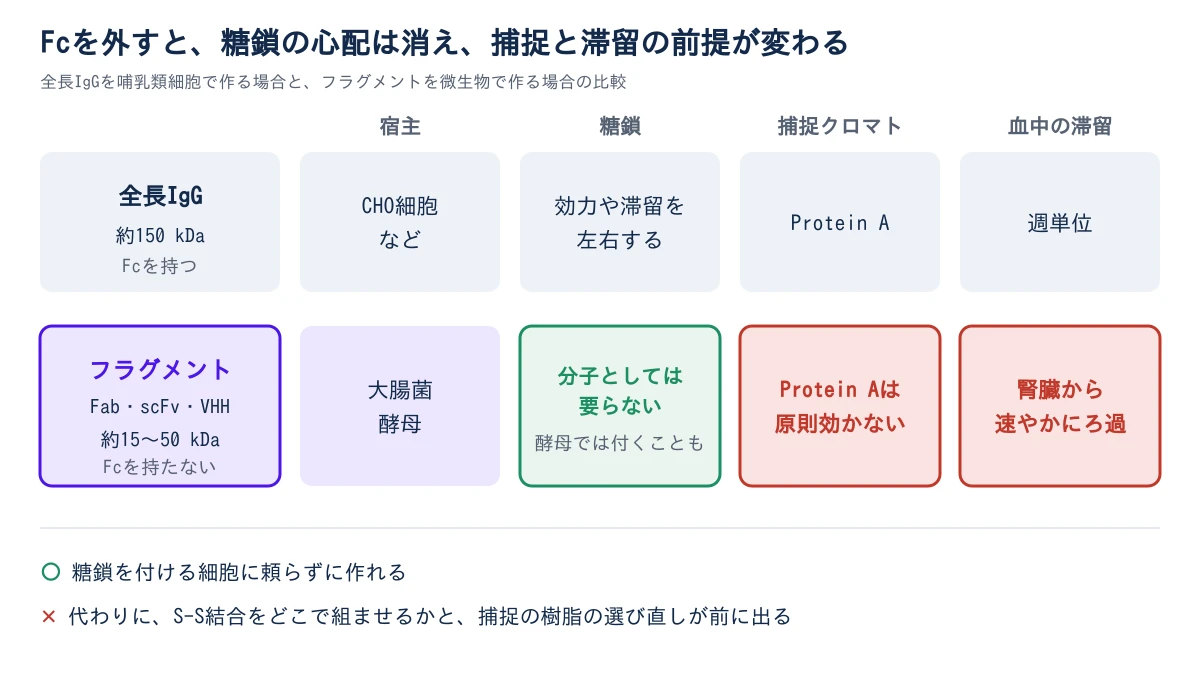
- なぜ微生物で作れるのか:Fcに付く糖鎖が分子として要らないので、糖鎖を付けられない宿主でも成り立ちます。
- 何が難しくなるのか:大腸菌の細胞質は還元的で、S-S結合が保たれません。組ませる場所を3つから選びます。
- 精製はどう変わるのか:Protein AはFcに結合するので効きません。軽鎖がκでも、VκIIに属する分子はProtein Lに付きません。
1. Fcを外すと、糖鎖の要求は消え、腎臓からの排泄が前に出る
フラグメントが微生物で作れるのは、Fcに付く糖鎖タンパク質に付加される糖の鎖状構造で、抗体の有効性・免疫原性などに影響する重要な品質特性。詳しく →が分子として要らないためです。 全長抗体をCHO細胞(チャイニーズハムスター卵巣細胞抗体など組換えタンパク質の生産に広く使われる、チャイニーズハムスター卵巣由来の培養細胞です。詳しく →)で作るのは、Fcの糖鎖が免疫細胞を呼ぶ働きや血中の安定性を左右し、その糖鎖はヒトに近い細胞でないと正しく付かないからです。Fcが無ければ、残るのはアミノ酸の鎖と、形を保つS-S結合だけになります。
医薬品に使われているのは、主に次の3種類です。
- Fab:抗原に結合する腕の部分で、重鎖の断片と軽鎖がS-S結合でつながった約50 kDaの分子です。
- scFv重鎖と軽鎖の可変ドメインを短いペプチドリンカーでつないだ1本鎖の抗体フラグメント。多価化しやすい。詳しく →:重鎖と軽鎖の可変部(抗原に結合する領域)だけを短いペプチドでつないだ、約25 kDaの分子です。
- VHHラクダ科の重鎖抗体に由来し、単一ドメインで抗原を認識する小さなフラグメント。対合ミスが起きず安定。詳しく →(重鎖だけの抗体の可変ドメイン):ラクダ科の動物が持つ、軽鎖のない抗体に由来する12〜15 kDaの分子です。
全長IgGは約150 kDaですから、VHHは10分の1です。組織の奥まで入りやすく、狭い隙間の抗原にも届きます。
ただし、小ささには代償があります。Fcを持たない分子はFcRn(抗体を細胞内から血中へ戻す受容体)による再循環を受けられず、さらに糸球体のろ過の大きさの境目より小さいので、腎臓から速やかに抜けます。VHHの血中半減期は約2時間と報告されており、全身投与で効かせるなら、滞留の設計は分子側で引き受けます(Bates & Power 2019)。
答え方は品目ごとに違います。眼の病気に使う抗VEGF(血管内皮増殖因子)のFabであるラニビズマブは眼の中に直接投与し、セルトリズマブ ペゴルはFab'にPEG(水に溶けやすい高分子)を結合させて分子を大きくし、カプラシズマブはVHHを2つつないでいます。
2. 大腸菌の細胞質は還元的なので、S-S結合は組む場所を選ぶ
冒頭の「バンドは出るのに結合しない」は、ここで起きています。大腸菌の細胞質細胞膜の内側のうち、核を除いた部分です。タンパク質の合成や多くの代謝反応がここで進みます。詳しく →はチオレドキシンとグルタチオンの系で還元的に保たれており、S-S結合が維持されません。 留め金のかからない鎖どうしが絡み合い、不溶性の塊(封入体)として溜まります。
組ませる場所は3つです。
- ペリプラズム大腸菌の内膜と外膜の間の区画。細胞質より酸化的で、ジスルフィド結合が形成されやすい。詳しく →へ送る:内膜と外膜のあいだの区画は酸化的で、DsbAがS-S結合を導入し、DsbBがDsbAを再酸化し、DsbCペリプラズムでジスルフィド結合の形成と組み直しを担う酵素群。DsbAが導入しDsbCが誤対合を直す。詳しく →が誤ってつながった組み合わせを組み替えます(Berkmen 2012)。分子の先に行き先を示すシグナル配列を付けて運びます。
- 細胞質で組める株を使う:trxBとgorを欠いた株を土台に、シグナル配列を外したDsbCを染色体へ入れた株が市販されています。収量にいちばん効いた条件は培養温度でした(Lobstein et al. 2012)。
- 封入体からリフォールディングする:溜まった塊を変性剤で溶かし、変性剤を抜きながら正しい形へ戻します。
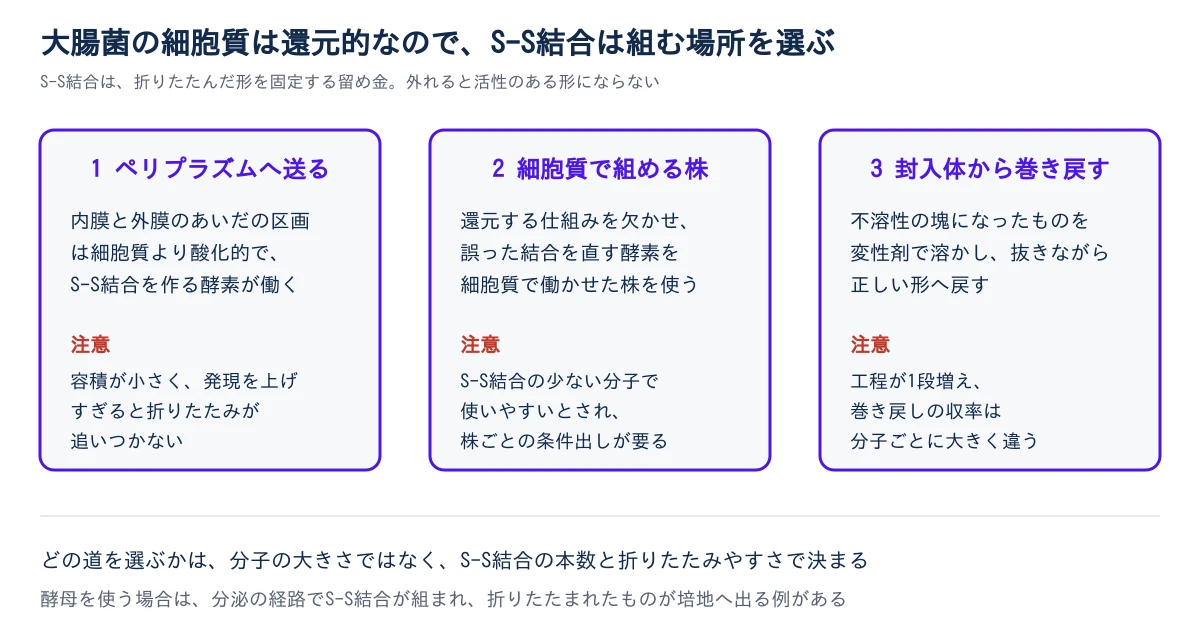
どれを選んでも、引き受ける制約があります。ペリプラズムは容積が小さく、発現を上げすぎると折りたたみが追いつきません。専用の株は株ごとの条件出しが要ります。封入体からの道は工程が1段増え、戻る割合は分子ごとに違います。手順と試薬は封入体のリフォールディングで扱っています。
大腸菌を選んだ時点では、まだ設計は決まっていません。S-S結合をどこで組ませるかまで決めて、ようやく工程の形が見えます。
3. 酵母の分泌と大腸菌のリフォールディングでは、収量が1桁違う
折りたたみを、細胞の外へ出る経路に任せる選び方もあります。
酵母を選ぶ理由は収量の大きさではなく、分泌の経路を通る過程でS-S結合が組まれ、折りたたまれた分子が培地細胞を体外で生存・増殖させるために必要な栄養・エネルギー源・成長因子などを含む液体または固体の環境基盤。詳しく →へ出てくることです。 代表は、メタノールを炭素源にできる Komagataella phaffiiメタノールを炭素源にできる酵母。強力なAOX1誘導と分泌生産に向き、高密度培養で組換えタンパク質を作る。詳しく →(旧名 Pichia pastoris)です。
同じFabを両方の宿主で作って比べた報告では、収量が次のように分かれました(Hinterholzer et al. 2023)。
- K. phaffii から分泌:培養液1 Lあたり2〜6 mg。メタノールを連続で加えて発現を誘導しています。
- 大腸菌から封入体を回収してリフォールディング:最初の精製を終えた時点で培養液1 Lあたり10〜45 mg。
収量だけを見れば大腸菌が上ですが、その10〜45 mgはリフォールディングの工程を1段足したあとの数字です。 分泌と封入体のどちらが有利かは、収量の桁と、追加する工程のどちらを受け持てるかで変わります。
| 項目 | 大腸菌 | 酵母(K. phaffii) |
|---|---|---|
| S-S結合 | 細胞質では組みにくく、ペリプラズム、専用の株、封入体からのリフォールディングのどれかを選ぶ | 分泌の経路で組まれ、折りたたまれたものが培地へ出る例がある |
| 糖鎖 | 付かない | 付く。配列にN型糖鎖が付く並びがあると、意図しない糖鎖が付く可能性がある |
| 主な混入物 | 内毒素(エンドトキシングラム陰性菌の外膜由来の発熱性物質(LPS)で、注射剤では厳しく管理し、LAL試験などで測定します。詳しく →) | 内毒素は持たない。宿主由来のタンパク質と糖が課題 |
| 大規模での負担 | 高密度の発酵が確立している | 誘導にメタノールを使うことが多く、毒性と引火の管理が重い |
酵母が付けるN型糖鎖は、ヒトの細胞が付けるものとは形が違います。意図せず付けば、免疫反応と分析の両方で説明すべきことが増えます。アルツハイマー病に関わるアミロイドβに対するscFvを両方の宿主で作って比べた報告では、Pichia 産のものに誤ったS-S結合も内毒素も検出されず、毒性を防ぐ働きは両者で同程度でした。
どの欄も、配列と設備を見れば発酵の条件を振る前に調べられます。培地は大腸菌 高密度発酵用培地・フィードと酵母 発酵培養用培地で比べられます。
4. Protein Aが効かないので、捕捉は軽鎖のサブグループで決まる
配列を読む必要は、回収でもう一度出てきます。
全長抗体の捕捉に使うProtein AはFcに結合するタンパク質なので、Fcを持たないフラグメントには原則として効きません。 全長抗体なら分子が変わっても同じレジンクロマトグラフィーで目的物や不純物を結合させる粒子状の充填材。精製モードごとに使い分ける。詳しく →を使えますが、フラグメントでは捕捉のレジンを分子ごとに選び直します。
例外が1つあります。可変領域抗体の抗原を認識する先端部分。CDRとフレームワーク領域からなり、標的にフィットするかで結合が決まる。詳しく →がVH3(重鎖可変部の配列ファミリーの1つ)に属する分子は、Fcとは別の部位でProtein Aに結合するため、この性質でFab、scFv、VHHを捕まえるレジンが市販されています。結合と溶出の条件は分子ごとに違い、溶出に使う酸で凝集するものもあります。
代わりによく使われるのがProtein L抗体の軽鎖(L)やFc領域(G)に結合するリガンドを使った担体で、Protein Aでは捕まえにくい抗体断片やサブクラスの精製に使われます。詳しく →系のレジンです。ここで効いてくるのが、軽鎖の可変部のサブグループです。
- VκI、VκIII、VκIV:Protein Lが結合します。
- VκII:κ軽鎖であっても、Protein Lは結合しません。
- λ(ラムダ)軽鎖:どのサブグループも結合しません。ラクダ科由来のリガンドで、κ鎖、λ鎖、Fab領域に対応するレジンなどを探します。
- VHH:軽鎖そのものを持たないので、Protein LもProtein Gも結合する相手がありません。
結合はκ鎖の可変部の立体構造に依存し、還元とアルキル化で構造を崩すと結合は完全に失われます(Nilson et al. 1992)。つまり、資材のメーカーに聞くことは「Protein Lで捕捉できるか」ではなく、「軽鎖はκのどのサブグループか、重鎖の可変部はVH3か」です。 候補はProtein L/Gアフィニティレジンで比べられます。
Protein Aが結合するのはFcと、VH3ファミリーの可変部です。配列を見ずに全長抗体と同じレジンで捕捉できると見込むと、捕捉の工程から組み直す手戻りが起きます。
大腸菌で作るなら、下流にもう1つの主題があります。内毒素(エンドトキシン)の除去です。哺乳類細胞の工程ではウイルスの管理が主題なので、同じ混入物の管理でも重心が違います。方法は微生物の内毒素除去と微生物由来タンパクの精製で解説しています。
5. まとめ:配列から4点を書き出して、宿主と捕捉を絞る順番
宿主やレジンのカタログを見る前に、手元の分子の配列から次の4点を書き出します。 ここまでの節は、すべてこの4点に帰ってきます。
- S-S結合は何本あるか:Fabのように5本あり折りたたみが難しいほど、ペリプラズムへ送る設計や、封入体からリフォールディングする工程の追加が現実的な選択肢に入ります。
- N型糖鎖が付く並びがあるか:酵母を使う計画なら先に確かめます。並びがあれば、大腸菌を選ぶか配列を見直すかの判断に入ります。
- 軽鎖はκのどのサブグループか:VκIIとλでは、Protein L系のレジンは候補から外れます。VHH(重鎖だけの抗体に由来する分子)も同じです。
- 重鎖の可変部はVH3(配列のファミリーの1つ)か:Protein A(Fcに結合するタンパク質)を使ったレジンで捕捉できるかが決まります。使える場合も、溶出の条件と凝集の有無は分子ごとに確かめます。
購買や品質保証の担当者は、大腸菌で作る計画に内毒素の除去と試験が工程として入っているかを見てください。哺乳類細胞の工程を写した計画では、ここが抜けやすい箇所です。
血中の半減期薬の血中濃度が半分に下がるまでの時間。抗体フラグメントでは短く、延長の工夫が要る。詳しく →をどう設計するかも、製造の条件が固まる前に決める項目です。局所への投与で短い半減期を活かすか、PEG(水に溶けやすい高分子)を結合させるか、2つつないで効力を補うか。どれを選んでも、原薬原薬。精製を終えた有効成分そのもので、製剤化する前の段階を指す。詳しく →の後ろに結合や精製の工程が増えます。
社内に実績のある宿主があるなら、それを出発点に、上の4点と照らして例外がないかを見るのが早い進め方です。
参考文献
- Nilson BH, Solomon A, Björck L, Akerström B. Protein L from Peptostreptococcus magnus binds to the kappa light chain variable domain. J Biol Chem. 1992;267(4):2234-9. PMID: 1733930(VκI・VκIII・VκIVは結合し、VκIIとλ軽鎖は結合しない。κ鎖可変部の立体構造に依存し、還元とアルキル化で結合が失われる)
- Lobstein J, et al. SHuffle, a novel Escherichia coli protein expression strain capable of correctly folding disulfide bonded proteins in its cytoplasm. Microb Cell Fact. 2012;11:56. PMID: 23046562(trxB gor 欠損の土台に、シグナル配列を外したDsbCを染色体へ導入。収量に最も効いたのは温度)
- Berkmen M. Production of disulfide-bonded proteins in Escherichia coli. Protein Expr Purif. 2012;82(1):240-51. PMID: 22085722(ペリプラズムのDsb系と、改変した細胞質でのS-S結合形成の機構)
- Hinterholzer A, et al. Strategies for the production of isotopically labelled Fab fragments of therapeutic antibodies in Komagataella phaffii (Pichia pastoris) and Escherichia coli for NMR studies. J Biomol NMR磁場の中で原子核が示す共鳴を測り、分子の化学構造や純度を調べる装置です。低分子医薬品の構造確認などに使われます。詳しく →. 2023.(Fabは5本のS-S結合を持ち、うち1本がC末端側で両鎖をつなぐ。K. phaffii 分泌で2〜6 mg/L、大腸菌のリフォールディングで最初の精製後に10〜45 mg/L、メタノール連続添加による誘導)
- Bates A, Power CA. David vs. Goliath: The Structure, Function, and Clinical Prospects of Antibody Fragments. Antibodies. 2019;8(2):28. PMID: 31544834(VHHは12〜15 kDaで糸球体のろ過の境目を下回り、半減期は約2時間。FcRnによる再循環を受けられない)
- Production of an anti-Aβ antibody fragment in Pichia pastoris and in vitro and in vivo validation of its therapeutic effect(Pichia産と大腸菌産のscFvの比較)
- Purification of antibody fragments and single domain antibodies using Protein A chromatography(VH3ファミリーとProtein Aの結合。メーカーの技術資料)
- European Medicines Agency, Cablivi (caplacizumab) Product Information(大腸菌で製造される二価のナノボディ)

次に読む
微生物・発酵/大腸菌この製造の全体像を、工程マップで見るこの記事から広げる
この分野の新着を、メールで受け取る
こうした製造・分析・品質の解説記事と、装置・試薬の新製品ニュースを毎週水曜の朝にお届けします。登録は無料で、いつでも解除できます。
登録によりプライバシーポリシーに同意したものとみなします。閲覧の記録(どのページから、どの会社のサイトへ移ったか)を、ご案内のために使います。
目次・関連閉じる


Proglenth(proglenth.com) https://www.proglenth.com/article/antibody-fragment-microbial-production