iPS細胞の足場(培養基質)とは?ラミニンや培地で未分化を保てる仕組み
iPS細胞体細胞を初期化して作る多能性幹細胞。同一株から繰り返し分化・製造でき均質性を高めやすい。詳しく →の足場(培養基質)とは、培養皿の底に塗って、iPS細胞が付く土台にするタンパク質のことです。ヒトのiPS細胞は、ばらされて付く場所を失うと多くが死んでしまうため、増やす工程では足場と培地細胞を体外で生存・増殖させるために必要な栄養・エネルギー源・成長因子などを含む液体または固体の環境基盤。詳しく →を組にして使います。
ただし、iPS細胞を未分化(まだ特定の種類の細胞になっていない状態)のまま保つ信号の多くは、足場ではなく培地の成分から来ています。足場の主な役目は、細胞が付いて生き延び、広がって増えるための土台です。
この記事では、足場が要る理由、細胞が足場をつかむ仕組み、足場の移り変わり、培地との役目の分け方を順に説明します。
- 足場(培養基質)とは:培養皿に塗って、iPS細胞を付かせるタンパク質です。臨床用の細胞を作る方法として、組換えのラミニン511の断片を使う培養が報告されています。
- なぜ要るのか:ヒトのiPS細胞は、1個ずつにばらされて皿にも隣の細胞にも付けないと、多くが細胞死を起こすためです。
- 未分化は何で保たれるのか:主に、培地に加えるFGF2(線維芽細胞増殖因子2)やアクチビンの信号です。足場だけでは未分化は保てません。
1. iPS細胞の足場(培養基質)とは何か
iPS細胞の足場(培養基質)とは、培養皿の底に薄く塗り、iPS細胞が付く面にするタンパク質のことです。 体の中の多くの細胞は細胞外マトリックス細胞が自ら分泌し、細胞の周囲を埋めて接着や組織の構造を支える物質の総称。(細胞の外にあって細胞を支えるタンパク質の網)に付いており、足場はその成分を皿の上に塗ったものです。
iPS細胞(人工多能性幹細胞さまざまな細胞へ分化できる能力を持つ幹細胞。オルガノイドなどの出発材料になる。詳しく →)は、体のさまざまな細胞になれる状態に戻した細胞で、増やす間は未分化のまま保ちます。その理由はiPS細胞の未分化維持とはで説明しています。
iPS細胞を増やす培養は、次の2つを組にして成り立ちます。
- 足場(培養基質):皿の底に塗る、ラミニンやビトロネクチン支持細胞(フィーダー)を使わずに幹細胞を培養するため、培養皿表面をラミニンやビトロネクチンなどの接着タンパクでコーティングする基材です。詳しく →のような細胞外マトリックス分析対象物が含まれる試料の背景成分(緩衝液・血清・細胞培養液など)の総称で、測定値に影響を与えうる。詳しく →のタンパク質です。細胞はここにつかまって付き、生き延び、平たく広がって増えます。
- 培地:細胞が浸かる液です。栄養に加えて、FGF2と、トランスフォーミング増殖因子βの仲間(TGF-β、アクチビン)のような、未分化を保つ信号になるタンパク質を含みます。
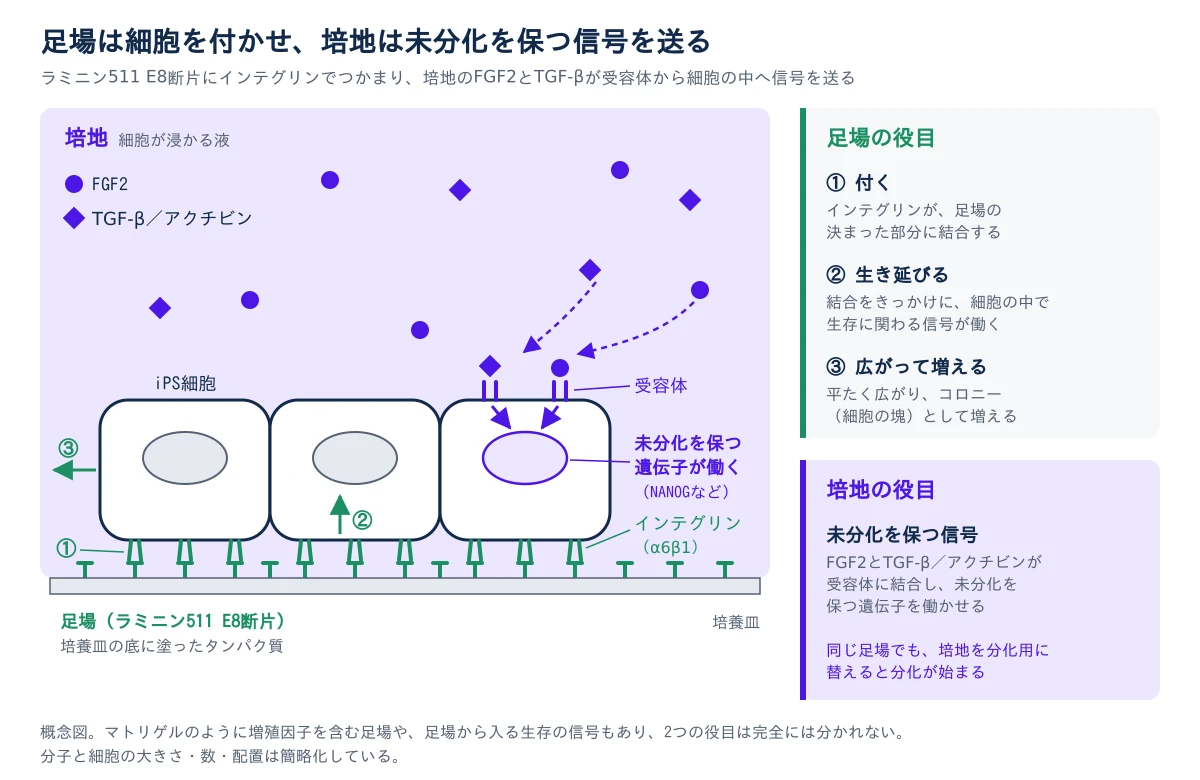
このように、足場と培地は同じ皿の中で別の役目を受け持っています。では、なぜiPS細胞には付く面がそれほど必要なのか。
2. なぜiPS細胞には足場が要るのか
ヒトのiPS細胞は、1個ずつにばらされて、皿にも隣の細胞にも付けない状態になると、多くが自ら死んでしまうためです。 これは、マウスのES細胞(胚性幹細胞)には無い、ヒトの細胞の性質です。
理由は2つあります。
- ばらすと細胞死が起きるため:継代(増えた細胞を分けて植え直すこと)で1個ずつにばらすと、隣の細胞との結合が切れます。すると細胞の形を保つアクチンとミオシンの線維が縮みすぎ、アポトーシス細胞が遺伝的プログラムに従って自発的に死に至る過程で、壊死とは異なり膜の完全性が初期段階では保たれる。詳しく →(細胞が自ら死ぬ仕組み)が起きます(Ohgushi 2010)。
- 付き直せないと生き残れないため:ばらした細胞が再び付いてコロニー(細胞が集まった塊)を作れないようにすると、生き残る割合は大きく下がります(Chen 2010)。
この縮みすぎを指令する酵素の1つが、ROCK(Rho結合キナーゼ)です。1個の細胞からコロニーができる割合(クローン効率)は、ばらしたヒトES細胞で約1%でしたが、ROCKの阻害剤トランスポーターの働きをふさぐ薬。他の基質薬の輸送を妨げ、短期間で濃度を変える。詳しく →(Y-27632)を加えると約27%に上がりました(Watanabe 2007)。
いまの培養でも、ばらした細胞を播くときにこの阻害剤を加え、翌日の培地交換で除く手順が使われています(CiRA財団 2021)。継代増殖した細胞を定期的に希釈・移植して培養を維持する操作で、回数が増えると細胞の性質が変化するリスクがある。詳しく →の手順はiPS細胞の増やし方と細胞バンクで説明しています。
このように、ばらしたiPS細胞を生かすには、付く面と、ばらした直後の細胞死を抑える手段の両方が要ります。では、細胞は足場をどうやってつかんでいるのか。
3. 細胞は足場をどうやってつかんでいるのか
細胞は、表面にある受容体で足場のタンパク質の決まった部分をつかみ、その結合を細胞の中の信号に変えています。 この受容体がインテグリン細胞表面にあり、細胞外マトリックスと結合して細胞の接着や情報伝達を担う受容体タンパク質。で、α鎖とβ鎖の2本が組になったタンパク質です。
インテグリンは細胞の中で、アクチン線維(細胞の形を作る骨組み)や、信号を伝えるタンパク質につながっています(Hynes 2002)。そのため、足場に付いた細胞では、次の3つが順に起きます。
- 付く:インテグリンが、足場の決まった部分に結合します。ラミニン511には主にα6β1、ビトロネクチンにはαvβ5という組が結合します(Rodin 2010、Braam 2008)。
- 生き延びる:結合をきっかけに、細胞の中で生存に関わる信号が働きます。ラミニンの断片に付いたヒトES細胞とiPS細胞では、ビトロネクチンなどに付いた細胞より、信号を伝える酵素(AKTなど)がよく働きました(Miyazaki 2012)。
- 広がって増える:細胞は平たく広がり、コロニーとして増えます。ラミニン511の上に小さな塊で播いたヒトES細胞は、1層に広がりました(Rodin 2010)。
つまり、足場の種類が変わると、細胞がつかまる受容体も、付き方の強さも変わります。では、実際にはどんな足場が使われてきたのか。
4. 足場には何が使われてきたのか
はじめはマウスの細胞を皿に敷くフィーダー細胞NK細胞の増殖を助けるために一緒に加える支持細胞です。刺激因子を提示してNK細胞を増やす役目を持ち、あらかじめ放射線処理して自らは増えないようにします。詳しく →が使われ、その後、細胞を敷かずにタンパク質だけを塗る足場へ移ってきました。 細胞を敷かない培養を、フィーダーフリー培養マウス線維芽細胞などのフィーダー細胞を使わず、培養容器をタンパク質でコーティングして幹細胞を培養する方法。と呼びます。
フィーダー細胞とは、iPS細胞の下に敷いて、付く面と細胞が出す成分を与える別の細胞のことで、ヒトのES細胞やiPS細胞ではマウス胎仔線維芽細胞(MEF)が使われてきました(Xu 2001、Nakagawa 2014)。
ただし、マウスのフィーダー細胞などから、ヒトの体では作られない糖(Neu5Gc非ヒト型のシアル酸で免疫原性リスクがあるが、CHO細胞はほとんど付加しない。詳しく →)がヒトES細胞に取り込まれたという報告があります。その細胞には、ヒトの血清にある抗体が結合しました(Martin 2005)。
フィーダー細胞と、代わりの足場の違いは次のとおりです。
| 足場 | 由来 | 組成 | 細胞の付き方 |
|---|---|---|---|
| フィーダー細胞(MEF) | マウスの胎仔の細胞 | 出す成分を特定しきれていない | 敷いた細胞の上でコロニーとして育つ |
| マトリゲル | マウスの腫瘍の抽出物 | 多くの成分の混合物 | ROCK阻害剤なしでは、ばらした細胞がコロニーを作りにくい |
| ビトロネクチン(組換え) | 遺伝子組換え遺伝子組換え技術を用いて微生物や細胞に目的タンパク質を産生させることで製造された成分を指し、動物由来成分を含まない点が特徴。詳しく →で作る | 1種類のタンパク質 | ばらした細胞にはROCK阻害剤を加える |
| ラミニン511 E8断片(組換え) | 遺伝子組換えで作る | 1種類のタンパク質の断片 | ROCK阻害剤なしでも、ばらした細胞がよく付く |
マトリゲルは、マウスの腫瘍から基底膜(細胞の層の下にある薄い膜)の成分を抽出したものです(Kleinman 2005)。組成が定まらないため、実験結果のばらつきの元になりうると指摘されています(Hughes 2010)。
これに対し、組換えのタンパク質は組成が定まっています。ビトロネクチンでも、ばらした細胞はROCKの阻害剤を加えると、マトリゲルと同じ程度に生き残ってコロニーを作りました(Chen 2011)。
ラミニン511は、α5・β1・γ1の3本の鎖からなるラミニンです(Aumailley 2005)。E8断片はそのうちインテグリンの結合に要る最小の部分で、ROCKの阻害剤を加えなくても、ばらした細胞がよく付きました(Miyazaki 2012)。
この断片を足場にした培養法は、臨床用のiPS細胞を作る方法として2014年に報告されています。同じ条件で播くと、ばらしたヒトES細胞は、この断片の上ではコロニーを作り、マトリゲルの上では作れませんでした(Nakagawa 2014)。
つまり、足場は、由来の分からない成分を減らし、ばらした細胞でも付けられる方向へ移ってきました。では、フィーダー細胞が担っていた、未分化を保つ役目はどこへ行ったのか。
5. 未分化を保つ信号は、足場と培地のどちらから来るのか
未分化を保つ信号の多くは、足場ではなく、培地に含まれるFGF2と、TGF-βやアクチビンから来ています。
フィーダー細胞を外して分かったこと
2001年の報告は、マトリゲルやラミニンの上でヒトES細胞を未分化のまま増やしましたが、培地にはMEFを浸けた液(馴化培地)を使っていました(Xu 2001)。その後、MEFがアクチビンAを出しており、これを培地に加えればフィーダー細胞も馴化培地も要らないと示されました(Beattie 2005)。
こうして、フィーダー細胞の2つの役目のうち、付く面は足場が、未分化を保つ成分は培地が引き継いでいます。
アクチビンやFGF2が伝える信号を阻害剤で止めると、ヒトES細胞は分化を始めます(Vallier 2005)。日々の培養で培地の条件がずれて未分化が崩れる例は、iPS細胞の未分化維持とはで扱います。
アクチビンの信号は、細胞の中で信号を伝えるタンパク質(SMAD2/3)を通じて、未分化を保つ遺伝子(NANOGiPS細胞が未分化・多能性を保っていることを示す指標分子。OCT4・SOX2・NANOGなどの発現で確認する。)を直接働かせます(Xu RH 2008)。
足場が同じでも、培地で結果は変わるのか
ラミニン511 E8断片を塗った皿でも、試した市販の培地の1つではiPS細胞を維持できず、別の1つではコロニーが平たい形になりました(Nakagawa 2014)。
逆に、心筋を作る手順はマトリゲルの上で(Lian 2013)、パーキンソン病の臨床試験はラミニン511 E8断片の上で(Sawamoto 2025)、分化用の培地を使って細胞を分化させています。
足場から入る信号は無いのか
ただし、足場も信号と無関係ではありません。インテグリンを通じた生存の信号に加え、マトリゲルにはTGF-βやFGF2などの増殖因子そのものが含まれます(Vukicevic 1992)。そのため、マトリゲルの上での結果は、足場の成分と増殖因子の働きを分けて読めません。
つまり、足場の性能は、組にした培地と切り離しては比べられません。では、自分の培養では、足場と培地を何から決めていけばよいのか。
6. 自分の培養では何から確かめるのか
まず細胞の使い道を決め、次にばらし方、足場と培地の組、替えたときの確かめ方の順に決めていきます。
- 細胞の使い道:臨床に使う細胞を作るなら、組成の分かる組換えタンパク質遺伝子組換えで微生物や細胞に作らせた目的タンパク質。宿主により折りたたみやコスト、糖鎖が異なる。詳しく →の足場と、動物由来の成分を含まない培地を候補にします。マトリゲルを使うなら、ロットを替えても結果が変わらないかを確かめます。
- ばらし方:1個ずつにばらして数えて播くか、小さな塊のまま播くかを決めます。1個ずつなら、ばらした細胞も付く足場と、ROCK(Rho結合キナーゼ)の阻害剤を組み合わせます。
- 足場と培地の組:報告やメーカーの資料の成績は、決まった培地と組にした結果です。自分の培地と同じ組の結果かを確かめます。
- 替えたときの確かめ方:足場や培地を替えたら、コロニーの形、未分化の細胞に特有の目印、核型(染色体の数と形)を、替える前の細胞と同じ方法で測って比べます。核型の調べ方はiPS細胞の核型解析とゲノム安定性で説明しています。
分化の始め方はiPS細胞の分化誘導、未分化の細胞が最後に残ると困る理由は残った未分化細胞はなぜ問題かで説明しています。足場はフィーダーフリー培養基材、培地はiPS・幹細胞 未分化維持培地で比べられます。
参考文献
- Ohgushi M, Matsumura M, Eiraku M, et al. Molecular pathway and cell state responsible for dissociation-induced apoptosis in human pluripotent stem cells. Cell Stem Cell. 2010;7(2):225-239.(ヒトES細胞はマウスES細胞と違い、ばらすとアポトーシスを起こしやすいこと。隣の細胞との接着が失われると、ROCKに依存してアクトミオシンが過剰に働くこと)
- Chen G, Hou Z, Gulbranson DR, Thomson JA. Actin-myosin contractility is responsible for the reduced viability of dissociated human embryonic stem cells. Cell Stem Cell. 2010;7(2):240-248.(ばらしたヒトES細胞が再び付いてコロニーを作れないと生存率細胞集団のうち生きている細胞の割合。凍結・培養の品質を示す基本指標。詳しく →が大きく下がること。ROCK阻害剤はアクチンとミオシンの収縮を抑えて効くこと)
- Watanabe K, Ueno M, Kamiya D, et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nat Biotechnol. 2007;25(6):681-686.(Y-27632でクローン効率が約1%から約27%に上がったこと)
- 公益財団法人京都大学iPS細胞研究財団, Feeder-Free法によるヒトiPS細胞の培養方法プロトコール(2021年8月4日作成。ラミニン511 E8断片を塗った皿に、ROCK阻害剤を加えた培地で細胞を播き、翌日の培地交換で除く手順)
- Hynes RO. Integrins: bidirectional, allosteric signaling machines. Cell. 2002;110(6):673-687.(インテグリンが接着の受容体として、細胞の中で細胞骨格と信号の経路につながること)
- Rodin S, Domogatskaya A, Ström S, et al. Long-term self-renewal of human pluripotent stem cells on human recombinant laminin-511. Nat Biotechnol. 2010;28(6):611-615.(組換えのヒトラミニン511の上での長期培養。小さな塊で播くと1層に広がり、付着はα6β1インテグリンに依存したこと)
- Braam SR, Zeinstra L, Litjens S, et al. Recombinant vitronectin is a functionally defined substrate that supports human embryonic stem cell self-renewal via αvβ5 integrin. Stem Cells. 2008;26(9):2257-2265.(ビトロネクチンへの付着はαvβ5、ラミニンへの付着はα6β1を介すること。組換えビトロネクチンがマトリゲルに代わる足場になったこと)
- Miyazaki T, Futaki S, Suemori H, et al. Laminin E8 fragments support efficient adhesion and expansion of dissociated human pluripotent stem cells. Nat Commun. 2012;3:1236.(E8断片はインテグリンの結合に要る最小の断片であること。ばらしたヒトES細胞・iPS細胞をマトリゲルや断片にしないラミニンより強く付かせ、インテグリンの下流のAKTなどの信号を強めたこと)
- Nakagawa M, Taniguchi Y, Senda S, et al. A novel efficient feeder-free culture system for the derivation of human induced pluripotent stem cells. Sci Rep. 2014;4:3594.(マウス由来のフィーダー細胞が広く使われ、用意に手間がかかり牛胎児血清を使うこと。ばらしたヒトES細胞は組換えラミニン511 E8断片の上でコロニーを作り、マトリゲルなどでは作れなかったこと。同じ断片の上でも、市販の培地によっては維持できなかったこと)
- Martin MJ, Muotri A, Gage F, Varki A. Human embryonic stem cells express an immunogenic nonhuman sialic acid. Nat Med. 2005;11(2):228-232.(マウスのフィーダーと動物由来の血清代替物からNeu5Gcが取り込まれ、ヒト血清の抗体が結合したこと)
- Kleinman HK, Martin GR. Matrigel: basement membrane matrix with biological activity. Semin Cancer Biol. 2005;15(5):378-386.(マトリゲルが腫瘍から抽出した基底膜の成分であること)
- Hughes CS, Postovit LM, Lajoie GA. Matrigel: a complex protein mixture required for optimal growth of cell culture. Proteomics. 2010;10(9):1886-1890.(マトリゲルは組成が定まった基質ではなく、実験結果のばらつきの元になりうること)
- Chen G, Gulbranson DR, Hou Z, et al. Chemically defined conditions for human iPSC derivation and culture. Nat Methods. 2011;8(5):424-429.(8種類の成分の培地。TGF-βかNodalが無いと長い継代で分化が出やすいこと。改変ビトロネクチンでは、ばらした細胞がROCK阻害剤を加えるとマトリゲルと同等に生き残り、コロニーを作ったこと)
- Aumailley M, Bruckner-Tuderman L, Carter WG, et al. A simplified laminin nomenclature. Matrix Biol. 2005;24(5):326-332.(ラミニンはα・β・γ鎖の三量体で、α5β1γ1をラミニン511と呼ぶこと)
- Xu C, Inokuma MS, Denham J, et al. Feeder-free growth of undifferentiated human embryonic stem cells. Nat Biotechnol. 2001;19(10):971-974.(MEFのフィーダーが要るとされていたヒトES細胞を、マトリゲルやラミニンとMEFの馴化培地で未分化のまま増やしたこと)
- Beattie GM, Lopez AD, Bucay N, et al. Activin A maintains pluripotency of human embryonic stem cells in the absence of feeder layers. Stem Cells. 2005;23(4):489-495.(MEFがアクチビンAを分泌すること。アクチビンAを加えた培地で、フィーダーも馴化培地も使わずに20継代を超えて未分化を保ったこと)
- Vallier L, Alexander M, Pedersen RA. Activin/Nodal and FGF pathways cooperate to maintain pluripotency of human embryonic stem cells. J Cell Sci. 2005;118(Pt 19):4495-4509.(アクチビン/NodalやFGFの信号を止めるとヒトES細胞が分化し、アクチビンかNodalとFGF2でフィーダーなしに未分化を保てたこと)
- Xu RH, Sampsell-Barron TL, Gu F, et al. NANOG is a direct target of TGFβ/activin-mediated SMAD signaling in human ESCs. Cell Stem Cell. 2008;3(2):196-206.(TGF-β/アクチビンに応じるSMADがNANOGのプロモーターRNAポリメラーゼが結合して転写を開始するDNA上の特定の塩基配列領域。詳しく →に直接結合し、未分化を保つこと)
- Lian X, Zhang J, Azarin SM, et al. Directed cardiomyocyte differentiation from human pluripotent stem cells by modulating Wnt/β-catenin signaling under fully defined conditions. Nat Protoc. 2013;8(1):162-175.(マトリゲルなどの上で未分化維持iPS細胞を多能性マーカーの発現を保ったまま、ゲノムを安定に保って増やす培養工程。後工程すべての土台。詳しく →培地で増やした細胞の培地を、分化用の培地に替えて誘導を始める手順)
- Sawamoto N, Doi D, Nakanishi E, et al. Phase I/II trial of iPS-cell-derived dopaminergic cells for Parkinson's disease. Nature. 2025;641:971-977.(ドパミン神経の前駆細胞の誘導で、iPS細胞をラミニン511 E8断片を塗った皿に播き、神経へ分化させる培地で培養したこと)
- Vukicevic S, Kleinman HK, Luyten FP, et al. Identification of multiple active growth factors in basement membrane Matrigel suggests caution in interpretation of cellular activity related to extracellular matrix components. Exp Cell Res. 1992;202(1):1-8.(マトリゲルにTGF-β、bFGF(FGF2)、EGFなどの増殖因子が含まれ、細胞の反応を読むときに注意が要ること)

- 1iPS細胞とは?「どんな細胞にもなれる」とはどういうことで、なぜ薬の材料になるのか
- 2iPS細胞の未分化維持とは?増やす間、なぜ「何にもなっていない状態」を保つのか
- 3iPS細胞の足場(培養基質)とは?ラミニンや培地で未分化を保てる仕組みいま読んだ記事
- 4iPS細胞はどう増やし、どう保管するのか?継代・凍結・細胞バンクの基本
- 5iPS細胞の分化誘導とは?同じ手順でも結果がばらつくのはなぜか
- 6増やす間は未分化を保つのに、最後に残ると困るのはなぜか?iPS細胞の「矛盾」を解く
- 7iPS細胞から作った細胞の純化とは?残った未分化細胞はなぜ問題で、どう見つけるのか
- 8iPS細胞のゲノムは培養で変わるのか?核型解析で何が分かり、何を見落とすのか
- 9iPS細胞由来の膵島、槽を5倍にして収量12倍の論文解説
次に読む
細胞治療/iPS細胞この製造の全体像を、工程マップで見る


この記事に関連する工程
この分野の新着を、メールで受け取る
こうした製造・分析・品質の解説記事と、装置・試薬の新製品ニュースを毎週水曜の朝にお届けします。登録は無料で、いつでも解除できます。
登録によりプライバシーポリシーに同意したものとみなします。閲覧の記録(どのページから、どの会社のサイトへ移ったか)を、ご案内のために使います。
目次・関連閉じる
- 1iPS細胞とは?「どんな細胞にもなれる」とはどういうことで、なぜ薬の材料になるのか
- 2iPS細胞の未分化維持とは?増やす間、なぜ「何にもなっていない状態」を保つのか
- 3iPS細胞の足場(培養基質)とは?ラミニンや培地で未分化を保てる仕組み
- 4iPS細胞はどう増やし、どう保管するのか?継代・凍結・細胞バンクの基本
- 5iPS細胞の分化誘導とは?同じ手順でも結果がばらつくのはなぜか
- 6増やす間は未分化を保つのに、最後に残ると困るのはなぜか?iPS細胞の「矛盾」を解く
- 7iPS細胞から作った細胞の純化とは?残った未分化細胞はなぜ問題で、どう見つけるのか
- 8iPS細胞のゲノムは培養で変わるのか?核型解析で何が分かり、何を見落とすのか
- 9iPS細胞由来の膵島、槽を5倍にして収量12倍の論文解説
 再生誘導医薬とは?細胞を入れず幹細胞を呼ぶ薬と脳梗塞試験の結果2026-07-27
 低免疫原性(hypoimmune)細胞とは?他家細胞の拒絶を避ける仕組み2026-07-24
 エクソソーム製造とは?分離法の選び方と品質の測り方2026-06-29
Proglenth(proglenth.com) https://www.proglenth.com/article/ipsc-culture-substrate-laminin